
从癌细胞到细菌:AFM纳米压痕如何读出生物力学信息
BIO-NANOMECHANICS · AFM INDENTATION
从癌细胞到细菌:AFM纳米压痕如何读出生物力学信息
细胞和细菌都很软,但“软”并不是一个孤立数字。压头形状、基底刚度、加载时间、黏附和内部压力共同决定测量结果。我们将用一套可检验的逻辑,把力曲线变成有生物意义的结论。
活细胞力学基底效应黏附与迁移细菌膨压探针模型
学完你将真正掌握
01. 理解AFM压痕怎样从力—位移曲线估计局部模量
02. 解释基底刚度为何会重塑细胞力学表型
03. 联合弹性、黏附和迁移识别癌细胞差异
04. 分离细菌细胞壁刚度与内部膨压
研究生物力学时,真正有价值的问题不是“这个细胞的模量是多少”,而是:这个数值来自哪一种结构、在什么时间尺度下成立、是否被培养基底放大,以及它能否解释黏附、迁移或生存能力。只有把测量链条和生物机制连起来,纳米压痕才不只是漂亮的箱线图。
01
为什么细胞力学值得测:疾病改变的不只是形状
机械表型可以补充生化标志,但不能脱离环境独立解释。
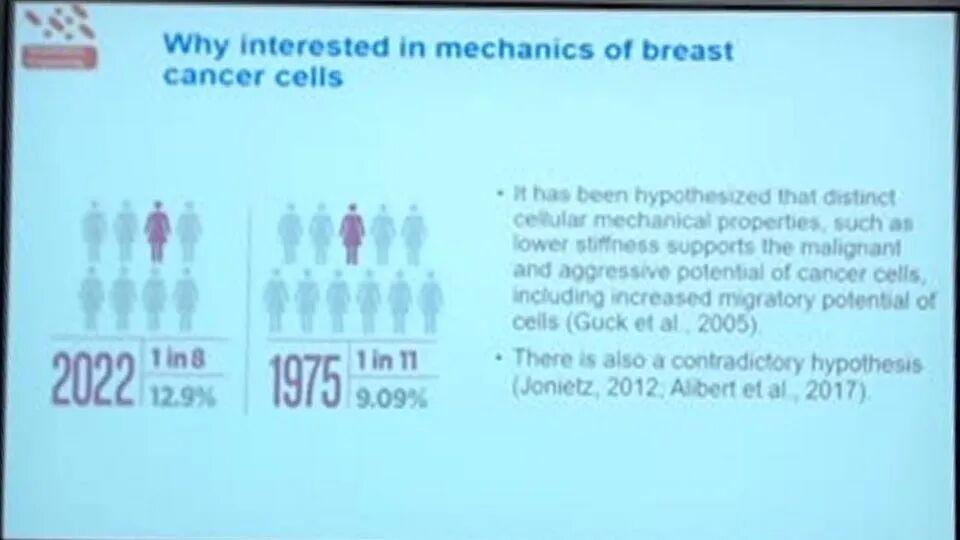
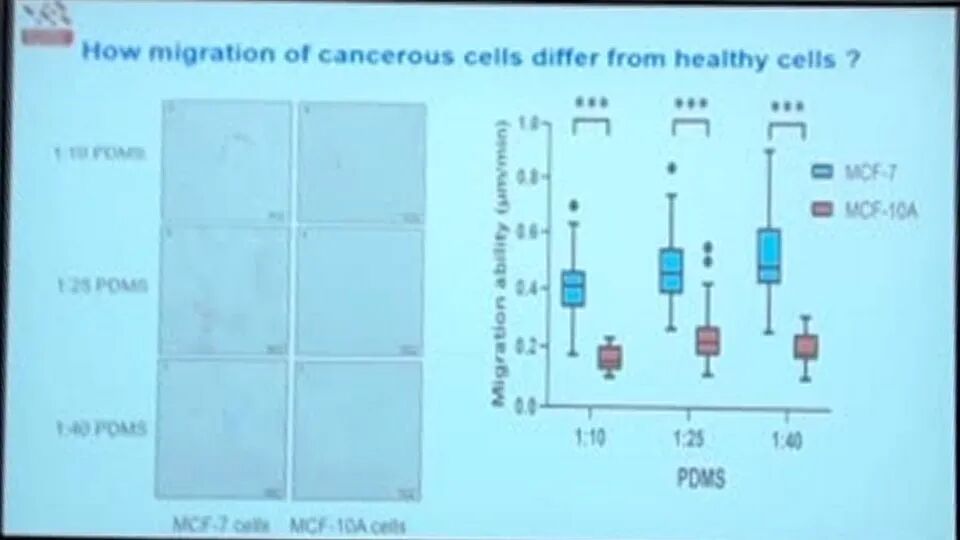
细胞骨架、细胞膜、细胞核和胞质共同承受外力。恶性转化往往伴随骨架重排、黏附连接改变和迁移能力增强,因此局部弹性、黏附力与运动速度可能发生协同变化。乳腺肿瘤研究的难点在于:同一种细胞放到不同刚度的细胞外基质上,形态和力学读数都可能改变。
02
AFM究竟测到了什么:从挠曲信号到接触模型
一条力曲线包含接触、压入、黏附和时间依赖四类信息。
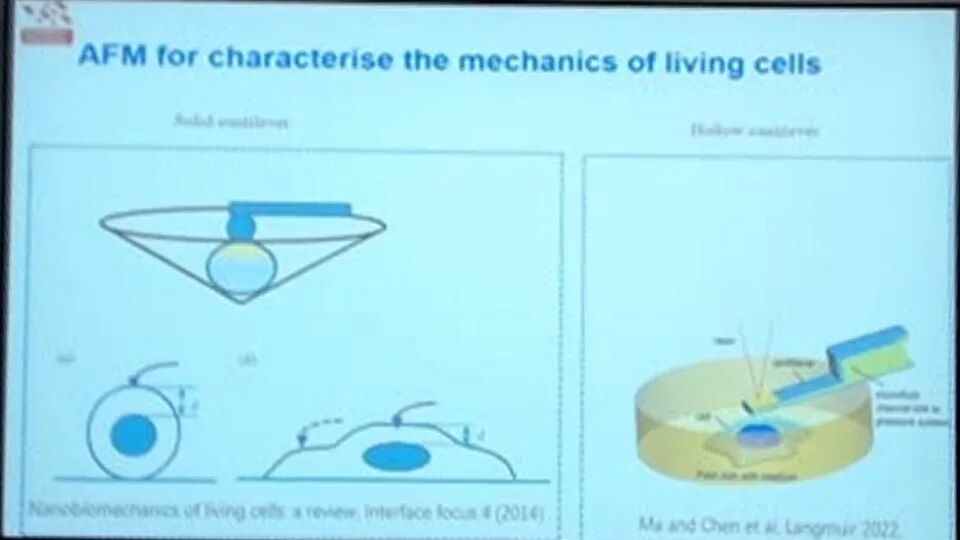
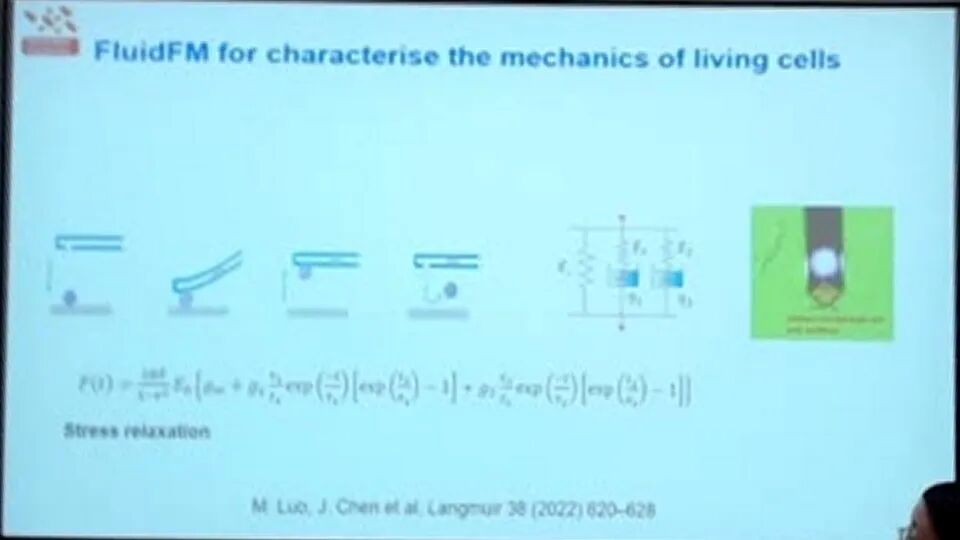
AFM利用悬臂梁挠曲换算载荷,用压电位移减去悬臂梁挠曲得到压入深度。探针接近样品时首先建立接触,继续压入后产生加载曲线;回撤阶段若细胞与探针存在黏附,会出现负载荷谷值。要得到模量,必须选取合适的接触点、压入区间、探针几何和泊松比。
SPHERICAL HERTZ CONTACT
F = (4/3)E*R1/2δ3/2
F为载荷,R为球形探针半径,δ为压入深度,E*为约化模量。该式要求小变形、近似均匀、无显著黏附且接触区远离硬基底。
对尖锐锥形或金字塔形探针,载荷通常与压入深度的平方相关;对球形探针则是3/2次方关系。几何选择不只是公式不同:尖锐探针空间分辨率高,却更容易产生局部高应变;球形探针接触更温和,平均的细胞体积更大。
03
基底刚度效应:细胞不是被动放在培养皿上
基底既影响测量,也会主动改变细胞自身。
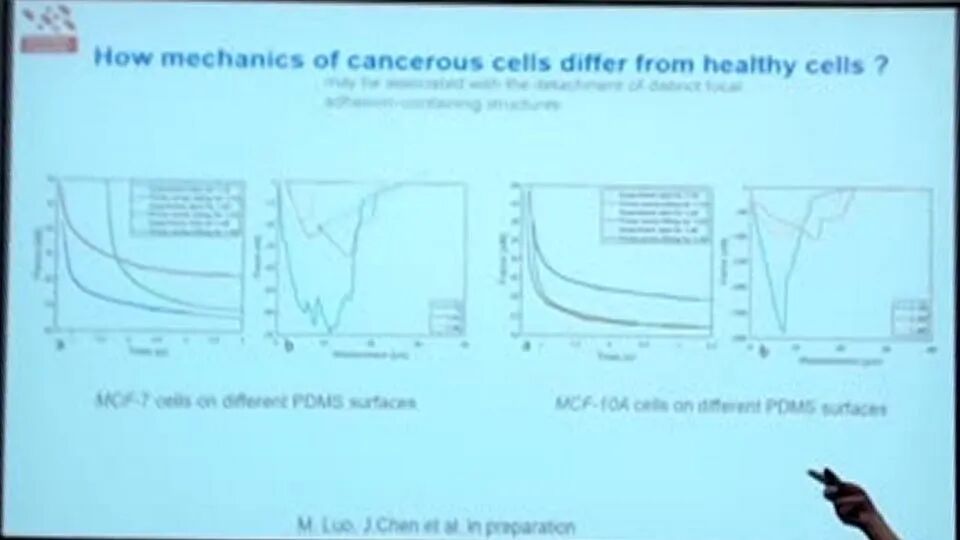
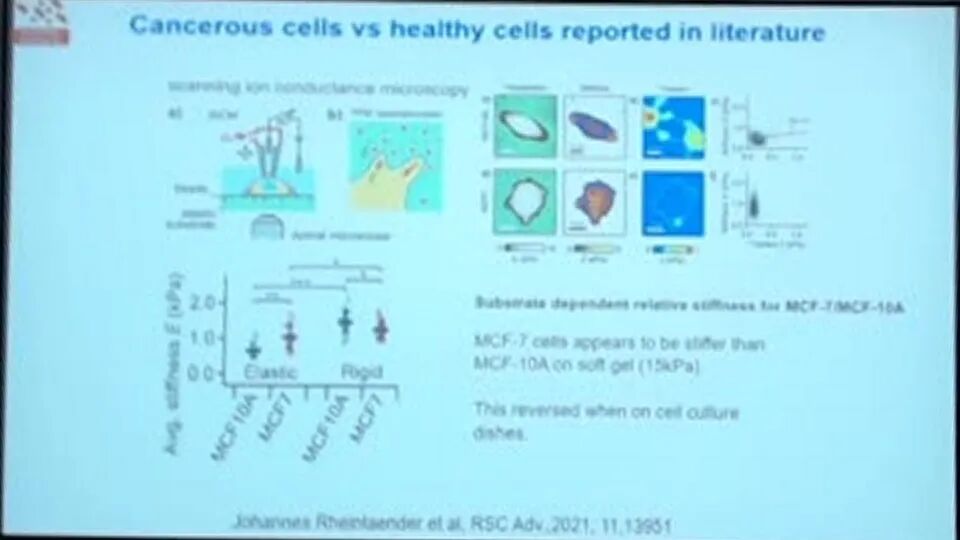
聚二甲基硅氧烷等可调刚度基底常用于模拟不同组织环境。软基底与硬基底会改变细胞铺展、应力纤维形成、黏附斑成熟和收缩张力。于是存在两种基底效应:一是压入太深时,探针“感觉到”下方基底;二是细胞经过力学感知后,真的重塑了自身。两者必须分开。
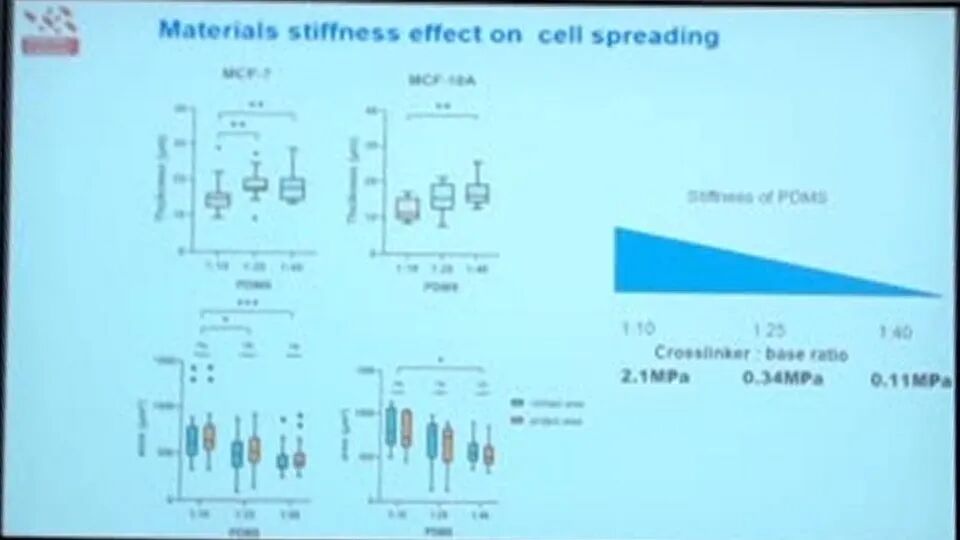
避免直接基底串扰的经验做法,是让压入深度远小于细胞局部厚度,并避开极薄的细胞边缘;但这仍无法消除细胞主动适应基底的生物效应。理想设计应同时记录细胞高度、铺展面积和细胞骨架形态,再解释模量变化。
04
不要只看模量:弹性、黏附与迁移要联合分析
三个指标分别对应承载、界面连接和运动能力。
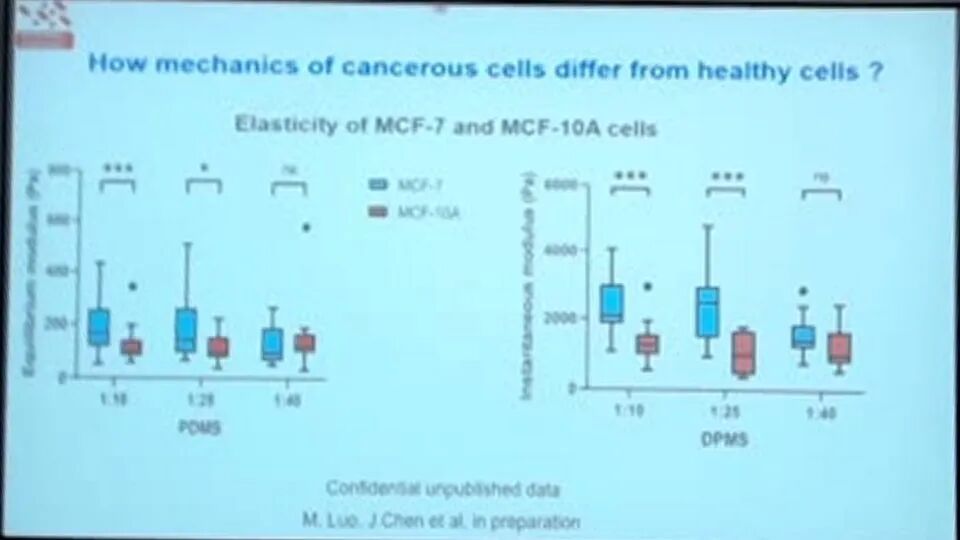
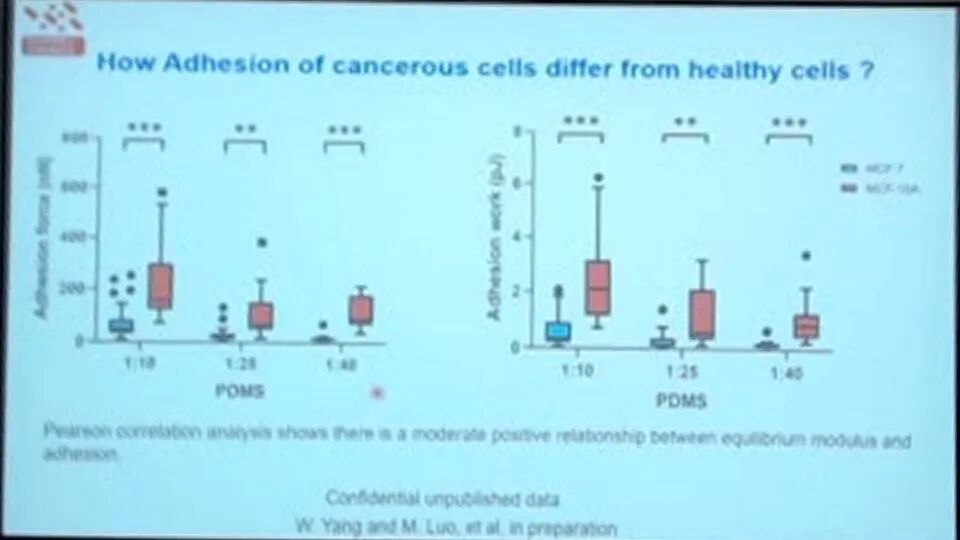
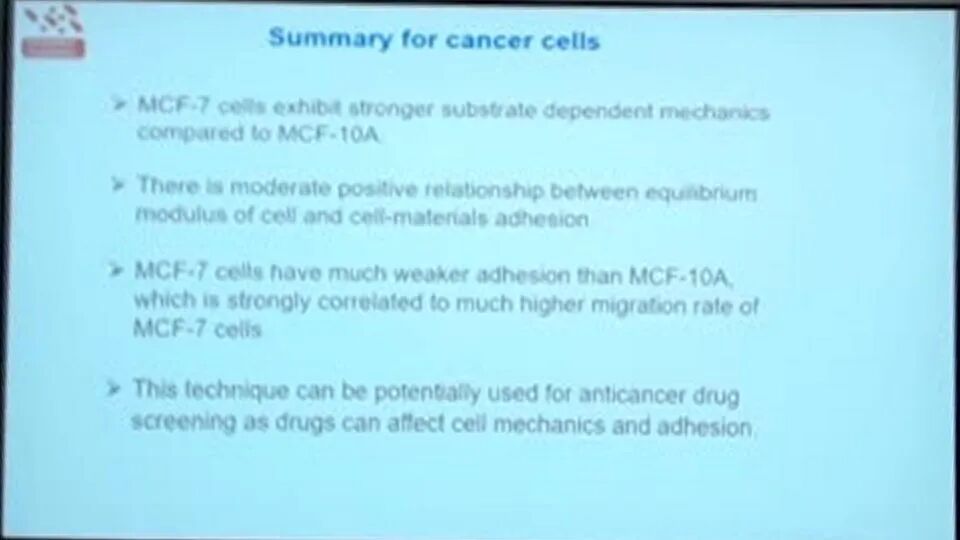
细胞弹性反映骨架和胞质对局部变形的抵抗;回撤曲线的最小力可估计探针—细胞黏附;迁移速度则把短时局部测量连接到较长时间的功能行为。若癌细胞表现为更强的基底依赖、更弱的黏附和更快的迁移,这组证据比单一模量差异更接近转移机制。
统计单位决定结论能否重复
一枚细胞上压入二十次,得到的是二十个技术测点,不是二十个独立生物样本。推荐先对单细胞内部测点求稳健中心值,再以细胞为单位比较;不同培养皿和不同实验日作为更高层级的重复。对于偏态分布,应同时给出中位数、四分位数和完整散点,并使用能处理层级结构的统计模型。这样可以避免某一个测点很多的细胞在总体结果中占据过大权重。
05
从细胞转向细菌:同一条曲线里混着壁刚度与膨压
细菌像“有压力的薄壳”,不能简单当作均匀弹性块体。
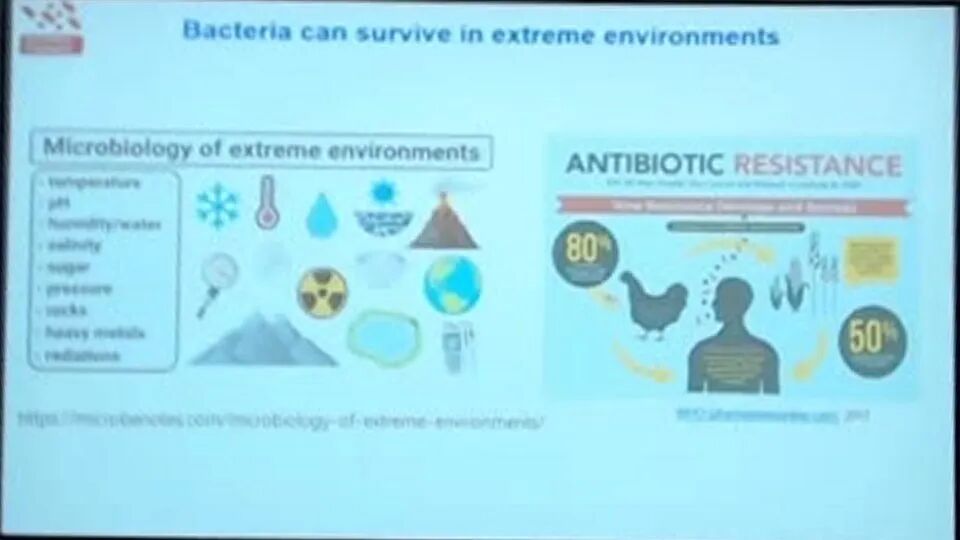
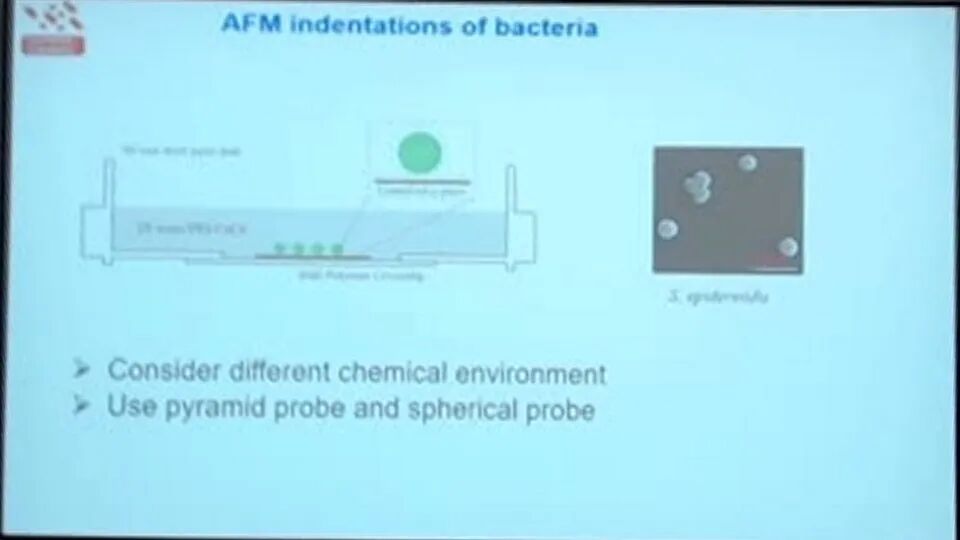
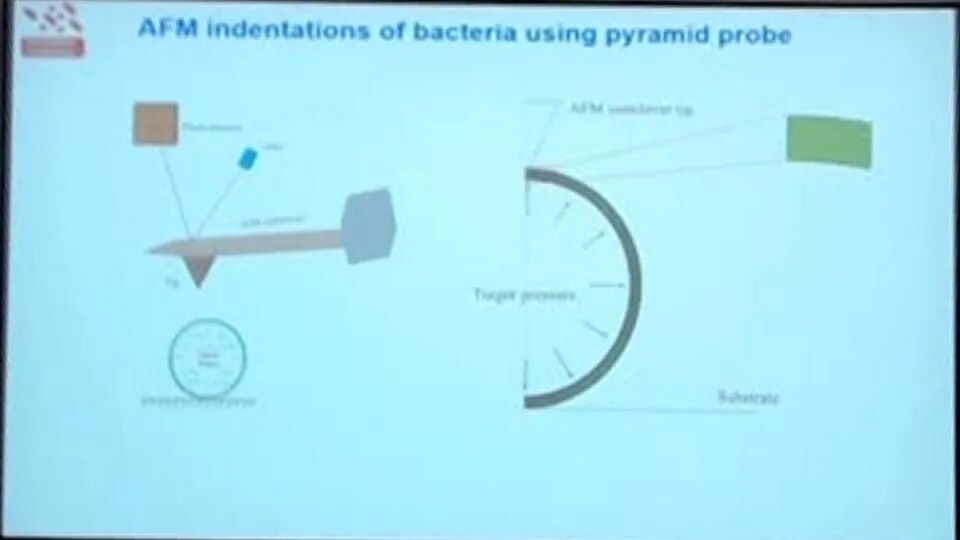
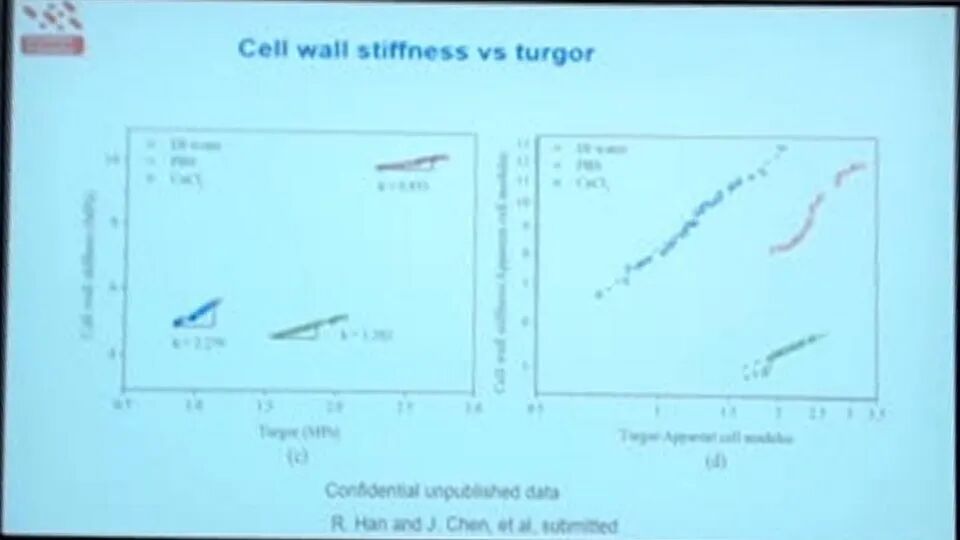
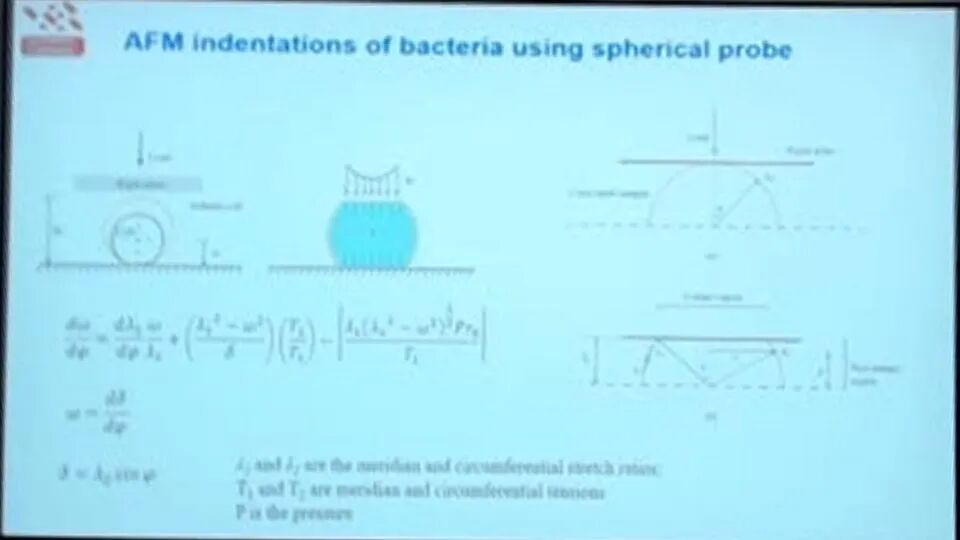
许多细菌能够在高盐、低温、酸碱或抗生素压力下存活。其机械稳定性来自细胞壁和内部膨压的共同作用:细胞壁提供壳体刚度,胞质与外界的渗透压差产生膨压。探针压入时,曲线斜率同时受到壁材料、壁厚、细胞半径和膨压影响。
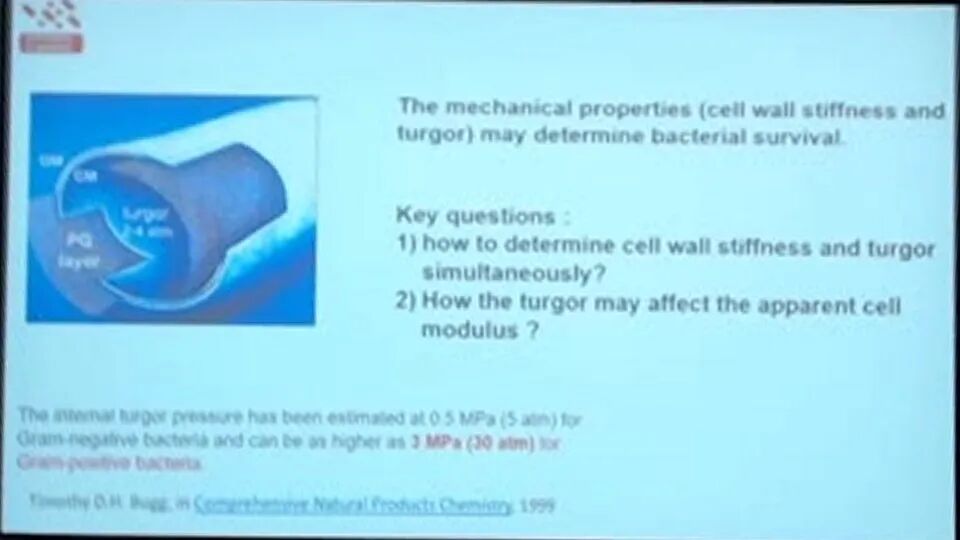
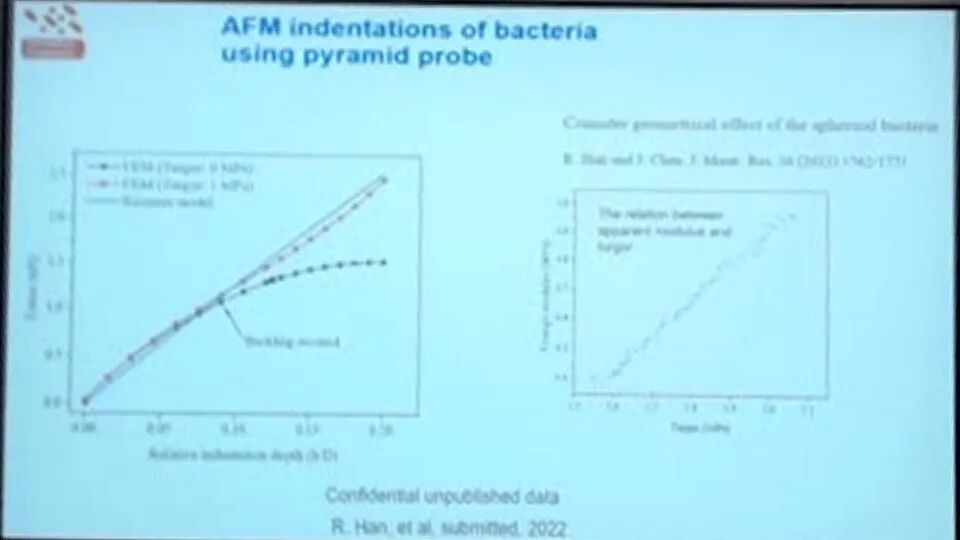
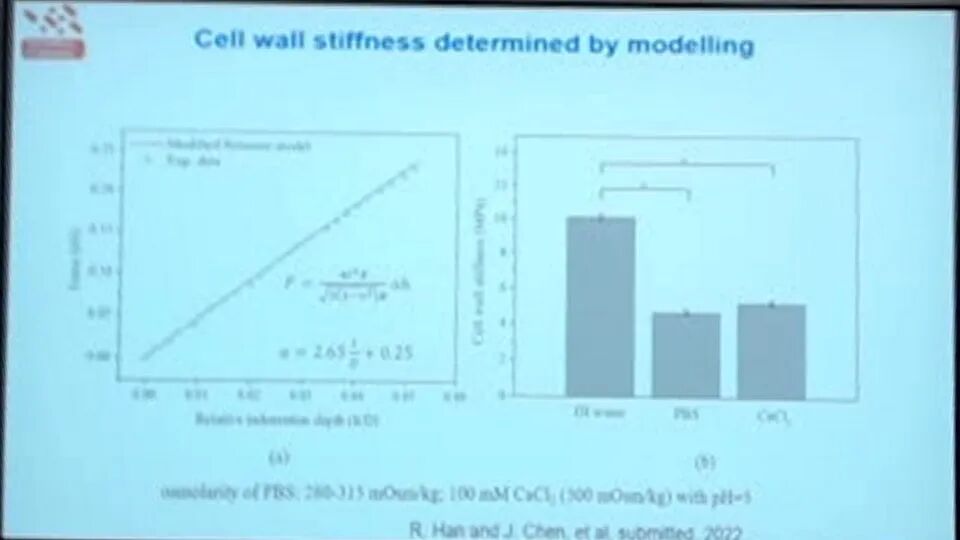
若外界离子浓度改变,细胞壁交联状态和跨膜渗透压都可能变化。只看到“曲线更陡”无法判断究竟是壁变硬还是膨压升高,因此需要不同探针几何、独立形貌测量和力学模型共同约束。
06
为什么要换探针:几何改变了对参数的敏感度
一个模型容易出现多组参数都能拟合同一条曲线。
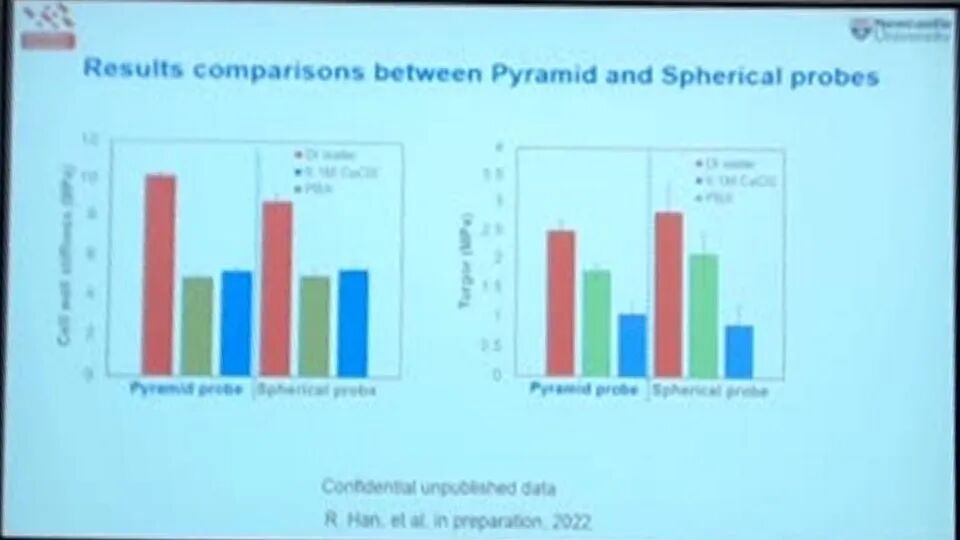
尖锐探针使应力集中在较小区域,对局部壁性质更敏感;球形探针接触面积更大,对整体形变和膨压贡献更敏感。把两种几何的数据放入同一力学框架,可减少“壁刚度—膨压互相补偿”的非唯一性。
PRESSURIZED SHELL VIEW
F = f(Ewall, t, R, p, δ, geometry)
测得载荷F由细胞壁模量Ewall、壁厚t、细胞半径R、膨压p、压入深度δ和探针几何共同决定;它不是单参数问题。
07
一套可复现的生物纳米压痕流程
把生物变异和仪器变异分别控制,结果才有可解释性。
探针标定:
在实际液体与温度下标定悬臂梁灵敏度和弹簧常数,记录探针几何与表面修饰。 样品状态:
统一培养时间、细胞密度、离子环境、温度、渗透压和测量等待时间。 空间位置:
细胞避开过薄边缘;细菌记录长轴、短轴、半径和压入位置。 加载协议:
报告接近速度、最大载荷或深度、保持时间、回撤速度与曲线筛选规则。 统计层级:
区分“每个细胞多个点”和“多个独立细胞/培养批次”,避免把技术重复当生物重复。 模型验证:
改变探针尺寸或加载速率,结合成像、迁移、渗透压或药物终点进行交叉验证。
TAKEAWAYS
把整堂课压缩成几条判断原则
细胞表观模量是环境、尺度和速率依赖参数,必须连同测试协议一起解释。
基底既可能直接进入接触力学,也可能通过机械感知重塑细胞本身。
弹性、黏附和迁移的联合证据,比单一力学数值更接近功能机制。
细菌是“受压薄壳”;用两种探针和联合模型,才能更可靠地区分壁刚度与膨压。


